Mostrando las entradas con la etiqueta Biología. Mostrar todas las entradas

martes, 27 de mayo de 2014

Fantasías Macromoleculares (post invitado)


Hola amantes del tocino. Esta semana tenemos un post invitado en el blog. El autor es Tomás Corrales, doctor en Física de la Universidad de Mainz, Alemania. Él nos cuenta sobre los temas que lo matuvieron ocupado en los últimos años, durante su doctorado y de su actual investigación sobre ADN, que lleva a cabo como investigador postdoctoral en la Universidad de Cornell, en EEUU.


¿Se han preguntado alguna vez de que están hechos todos estos materiales relativamente blandos que se encuentran a nuestro alrededor y que usamos día a día? Sólo por nombrar algunos ejemplos: las bolsas del supermercado, los envases de yogurt, los recubrimientos de las píldoras, las llantas de un auto y los pañales para bebés. El denominador común entre todos materiales es que están hechos de moléculas muy especiales llamadas macromoléculas. Las macromoléculas se encuentran en casi todos los materiales que usamos a diario, (ver más ejemplos), pero aún más importante, son fundamentales en la organización de la vida como la conocemos. Dos grandes ejemplos biológicos de macromoléculas son las proteínas y nuestro propio ADN, en cuya estructura se codifica la información genética de los seres vivos. ¿Pero, qué es una macromolécula? La palabra en sí lo dice todo, es una molécula…“gigante”, tan grande, que agregarle o quitarle unos cuantos átomos no afectan sus propiedades, es casi como si le sobrasen átomos. Típicamente una macromolécula puede tener dimensiones desde 1 nanómetro (la millonésima parte de un milímetro) hasta llegar a los micrones (la milésima parte de un milímetro). 
 
Si bien hoy en día el uso de macromoléculas es trivial, y cada día aparecen productos con propiedades mejoradas (más ligero, más resistente, etc), su descubrimiento y la manipulación de sus propiedades no lo fueron tanto. Materiales hechos de macromoléculas, como el caucho, las fibras de algodón e incluso los primeros plásticos, ya eran utilizados mucho antes de que se supiese realmente de que estaban hechos. No fue sino hasta 1920 que el concepto de macromolécula fue propuesto por el químico alemán Hermann Staudinger. En un comienzo, la idea de Staudinger fue controversial. Los científicos de la época creían que materiales como el caucho consistían en grandes agrupaciones de moléculas pequeñas que eran atraídas por fuerzas eléctricas, formando partículas o coloides. Staudinger en cambio, fue el primero que propuso que materiales como el caucho estaban hechos de macromoléculas compuestas por cientos o miles de átomos unidos por enlaces covalentes. Al cabo del tiempo, los desarrollos experimentales y teóricos de la década de los 20 le dieron la razón a Staudinger, y de paso, el premio Nobel de química en 1953. En la naturaleza se pueden encontrar muchos tipos de macromoléculas distintas, pero en el tocino de hoy sólo hablaré de dos, polímeros sintéticos y el ADN.


Figura 1: a) Representación de un polímero lineal, con su característica forma de culebra, o fideo. b) Composición química del polímero lineal más simple, el polietileno, en donde las barras negras indican enlaces covalentes. Los puntos suspensivos al final de cada lado indican que la estructura formada por el carbono y los dos hidrógenos se puede repetir y repetir.

Los plásticos son un ejemplo de materiales que están hechos de polímeros sintéticos. Un polímero se caracteriza por ser una especie de culebra (figura 1a), con una unidad química que se repite a lo largo del espacio, formando una cadena. Uno de los polímeros más simples es el polietileno (figura 1b), el cual consiste en átomos de carbón unidos por enlace covalentes formando una cadena lineal. A los costados de esta cadena se conectan además átomos de hidrógeno. En forma condensada, los polímeros pueden formar materiales con distintas propiedades. El largo de la cadena, sus ramificaciones y la flexibilidad intrínseca de la molécula controlan la dureza del plástico y también a qué temperatura se ablanda. Si hiciéramos un zoom a una bolsa de plástico de polietileno y tomásemos un área de 10x10 nanómetros, veríamos una especie de tallarinata de moléculas (figura 2).


Figura 2: Si pudiésemos hacer una imagen nanoscópica de una bolsa de plástico de polietileno (izquierda) veríamos que está compuesta por muchas moléculas largas parecidas a un tallarín (centro) condensadas de manera desordenada. Si magnificáramos nuevamente un solo tallarín veríamos una estructura de átomos de carbono (círculos negros) que forman una cadena en zigzag, con átomos de hidrogeno a sus costados (círculos blancos).

Para no aburrirlos con definiciones tediosas, pasemos a algo un poco más entretenido, ¿Cómo estudiar y visualizar estas macromoléculas? ¿O más interesante aún, como estirar o apretar macromoléculas individuales? Sin duda, uno de los instrumentos más versátiles y revolucionarios en nanotecnología ha sido el microscopio de fuerza atómica (o AFM por sus siglas en inglés). Este instrumento permite visualizar, así como también manipular macromoléculas individuales. El AFM fue desarrollado en 1989 por Gerd Binning y Heinrich Rohrer, sólo unos cuantos años después de la invención del microscopio de efecto túnel (STM), por el cual Binning y Rohrer recibieron el premio Nobel de física de 1986. El AFM funciona palpando el objeto o superficie, utilizando una aguja de silicio del tamaño de algunos átomos; digamos que éste es como un microscopio ciego (figura 3a). Esta técnica ha permitido a científicos ver objetos más chicos que cualquier método óptico haya podido resolver, llegando a ver átomos individuales. La aguja atómica de un AFM se sitúa al final de una barrita de silicio (figura 3b y c), la cual se deforma cada vez que la punta de la aguja toca la superficie. Al barrer esta aguja de silicio sobre la superficie un objeto se genera un mapa de la deformación de la barra de silicio, la cual nos da información sobre la topografía de nuestra superficie. El AFM puede hacer imágenes de casi cualquier material, sea aislante o conductor, lo cual le da una ventaja por sobre el STM que requiere de superficies conductoras.
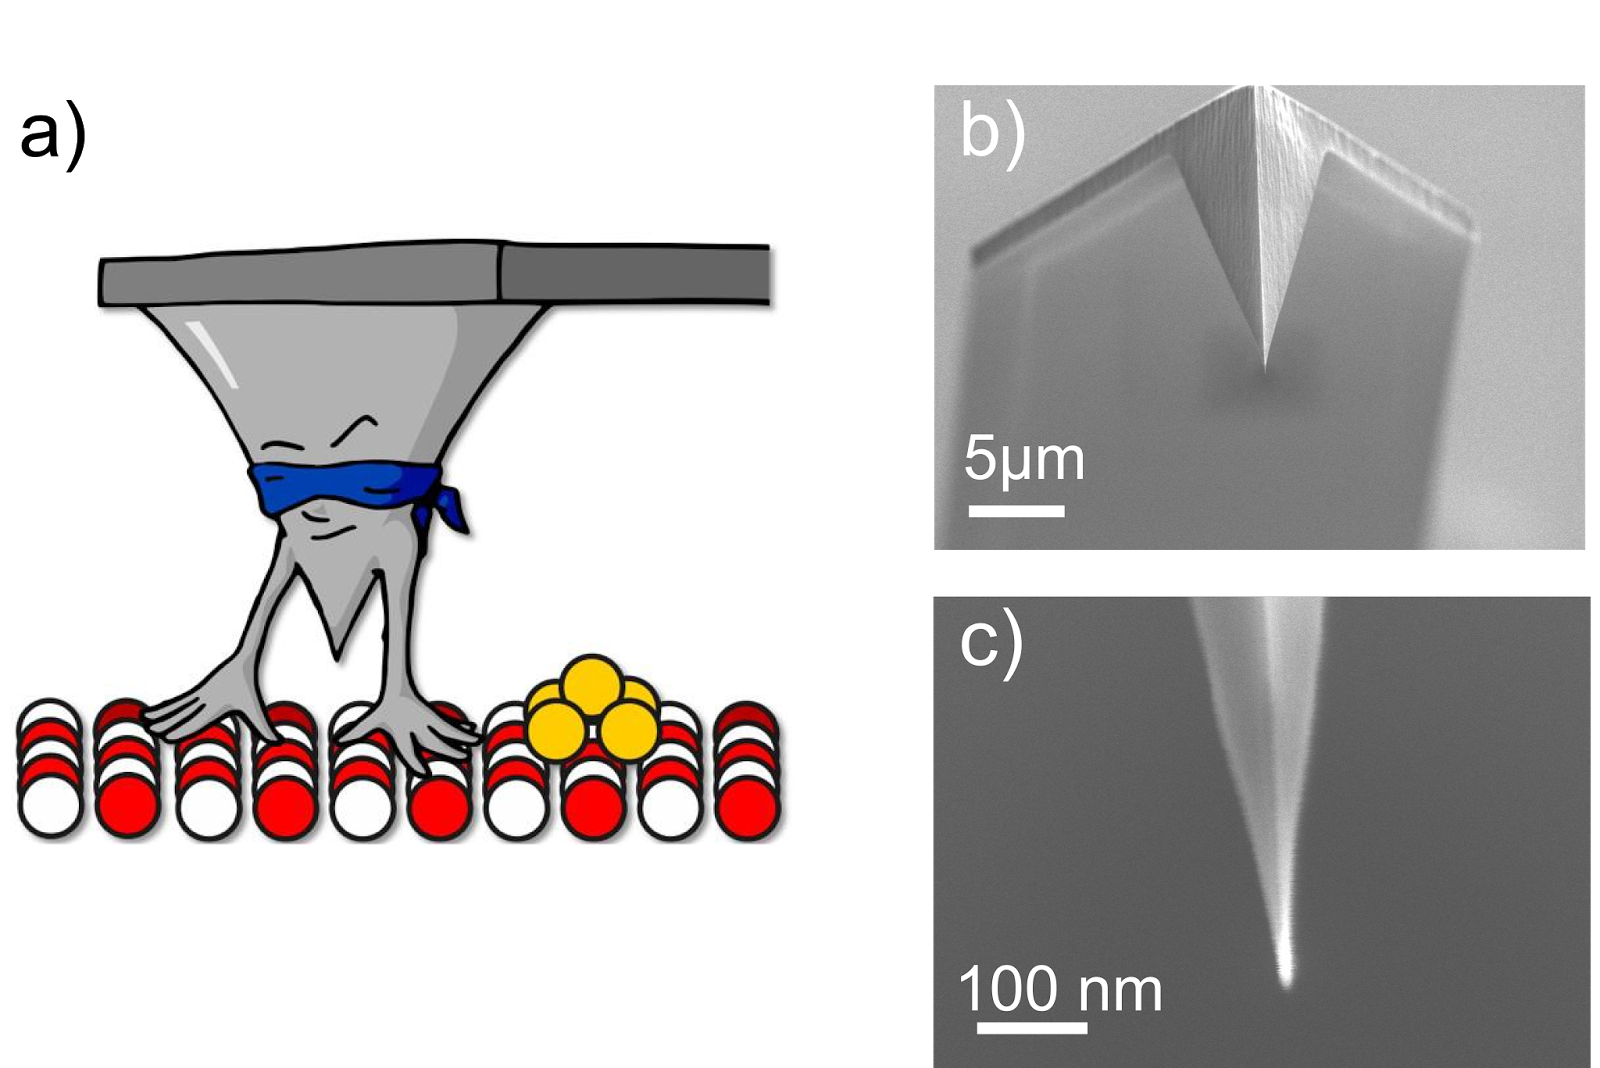
Figura 3: a) Caricatura del AFM, un microscopio ciego que “siente” los átomos de una superficie (círculos rojo y blancos). Ojo, la punta del AFM no tiene manos, lo que siente la aguja del AFM son fuerzas de repulsión y atracción eléctricas entre los átomos de la punta y los átomos de la superficie. Las imagen b) muestran una punta de AFM real con su respectiva barrita de silicio (cantiléver en inglés). En c) se muestra una imagen magnificada de la punta. La punta de una aguja comercial puede llegar a tener entre 1 y 5 nanometros. Las imágenes b) y c) fueron obtenidas usando un microscopio de barrido electrónico (SEM por sus siglas en inglés) y se pueden encontrar en mi tesis :) (Link).
Otra ventaja del AFM es que se puede utilizar en distintos medios, por ejemplo, en medios acuosos, los cuales son relevantes para estudiar macromoléculas biológicas. Un ejemplo de la capacidad de esta técnica que me parece interesante, fue publicado hace alrededor de 2 años, en donde se visualiza por primera vez en espacio real la doble hélice de una molécula de ADN. La estructura de doble hélice del ADN fue descubierta hace más de 50 años usando difracción de rayos X (esto da para otro tocinazo), pero hasta ahora nadie había generado una visualización es espacio real de esta hélice. En la imagen generada por AFM aparece una molécula individual de ADN, si, es ese tallarín largo que aparece acostado sobre la superficie plana (figura 4a)!. La doble hélice aparecen como líneas diagonales al eje largo de la molécula, indicadas con flechas verdes (figura 4b). 

Figura 4: a) Una molécula individual de ADN acostada sobre una superficie plana. La imagen fue tomada en un medio líquido. La región encerrada en el cuadrado punteado indica donde se hará una magnificación. b) Imagen magnificada tomada de la imagen anterior. En esta imagen se puede ver la doble hélice del ADN indicado por pares de flechas verdes. Estas imágenes fueron obtenidas por el grupo del Dr. Bart Hoogenboom, investigador del University Collegue London, y aparecieron publicadas hace dos años en Nano Letters, 2012, 12 (7), pp 3846–3850. Este año este grupo ha obtenido imágenes aún más espectaculares de la doble hélice (link).
Aparte de poder visualizar macromoléculas ocupando AFM, se ha demostrado que se pueden medir las propiedades mecánicas de macromoléculas individuales usando la punta del AFM para estirarlas. La fuerza con la que se pueden estirar una macromolécula ocupando AFM va desde los cientos de nanonewton (1 nN = 0.000000001 N) hasta la aproximadamente la centésima parte de un nanonewton (0.01 nN). Para poner esto en contexto, si tomase una manzana de alrededor de 100 gramos, esta ejercería una fuerza de 1 Newton sobre mí mano. Usando estas pequeñísimas fuerzas se pueden estirar varios tipos de macromolécula, incluyendo proteínas, polímeros y ADN. Una aplicación de esto es estudiar cómo se doblan las proteínas. Desafortunadamente las fuerzas involucradas en procesos biológicos relevantes para el ADN son mucho menores a las fuerzas que se pueden lograr utilizando un AFM. Típicamente para leer y copiar un segmento de ADN, proceso que ocurre constantemente dentro de nuestro cuerpo, se requieren del orden de milésimas de nanonewton (0.001 nN = 1 piconewton - pN). Tales fuerzas están fuera del alcance de un AFM, por lo cual nuevas técnicas han sido desarrolladas. Una de estas técnicas, que ha tomado relevancia en las últimas décadas para aplicar fuerzas del orden de piconewtons a macromoléculas, son las llamadas pinzas ópticas. Utilizando pinzas ópticas, se pueden estirar moléculas como el ADN con fuerzas iguales o menores a 1 pN (= 0.000000000001 Newtons, y si, hay 12 posiciones decimales en ese número). Las pinzas ópticas funcionan bajo el siguiente concepto básico: atrapar y manipular micropartículas que se encuentran flotando en una solución liquida. Tales micropartículas pueden ser, por ejemplo, esferas de vidrio del tamaño de 1 micrómetro (milésima de un milímetro). En el caso de las pinzas ópticas, la microparticula se atrapa usando la radiación óptica de un láser. La microparticula es atraída y queda atrapada cerca del punto donde el láser se enfoca. Al mover la posición del foco del láser lateralmente dentro de la solución, uno puede mover la micropartícula (figura 5a). Ahora imaginen que esta microparticula está anclada a una superficie por medio de una molécula de ADN, tal como un niño que sujeta un globo de helio con un cordel (figura 5b). Al mover la microparticula, el ADN se estira y se genera una fuerza. Esta trampa óptica puede estirar un pedazo de ADN con fuerzas que van desde los 0.1 pN hasta ~50 pN. Si uno grafica la fuerza con que se estira el ADN versus su extensión (figura 5c) uno se da cuenta que no se comporta como un elástico. Según la ley de Hooke un elástico se comportaría de manera lineal en un gráfico de fuerza versus extensión. El ADN en este caso tiene dos contribuciones, a bajas fuerzas (menos a 20 pN), el ADN se tiene que desenredar de su estado relajado (y desordenado). Cuando ya totalmente estirado (sobre 20 pN) el ADN empieza a comportarse como un elástico. 

Figura 5: a) Usando un láser se pueden atrapar microparticulas, generalmente de vidrio. Usando reacciones bioquímicas una molécula de ADN se puede adherir a la microparticula de un extremo y a una superficie plana desde el otro extremo. b) Muestra una analogía a este concepto de anclaje, donde en vez de usar un láser, el cordel se tensiona cuando sopla una ráfaga de viento, moviendo el globo. La imagen c) muestra datos experimentales de una molécula de ADN la estirarse. Este gráfico fue obtenido por el grupo del Dr. Steven Block en 1997 y fue publicado en la revista Biophysical Journal 72(3): 1335–1346.
Las pinzas ópticas permiten estudiar procesos biológicos, como la transcripción de segmentos de ADN, replicando las condiciones en las que suceden dentro del cuerpo humano, lo cual era impensado hace tan sólo 20 años. Como si fuese poco, en los últimos años, científicos han desarrollado formas de rotar micropartículas para así aplicar torque sobre moléculas individuales de ADN.
¿Cuál es el futuro de todo esto? Esta es una pregunta personal, que no tiene una respuesta única, sino más bien una humilde opinión. Para mí, uno de los mayores retos en esta área es entender que rol juegan las propiedades mecánicas del ADN al momento de enrollarse para formar el cromosoma. El cromosoma humano suele tener un tamaño del orden de micrómetros, si desenrollásemos esta estructura obtendríamos una fibra de ADN que llegaría a tener centímetros de largo. El proceso de densificación del ADN para llegar formar el cromosoma es bastante complejo (figura 6), entender como el ADN se dobla y tuerce nos dará un entendimiento más profundo de este proceso. Por otro lado, sería interesante estudiar como un pedazo individual de ADN interactúa con la masa densificada de ADN que es el cromosoma. ¿Existirán secuencias de ADN que son más flexibles que otras? ¿Sufrirá algún cambio estructural el ADN al enrollarse en el cromosoma? Estas son solo algunas de las preguntas que me motivan a estudiar estos bichos, además de la posibilidad de desarrollar nuevas técnicas con las cuales estirar y jugar con estas macromoléculas, molécula a la vez. 


Figura 6: Los distintos niveles de compactación del ADN para formar el cromosoma humano.

lunes, 28 de octubre de 2013

Ciencia Picante


Para muchos la sensación de picante del ají es uno de los mayores placeres en la comida. Por ejemplo, nuestros amigos mexicanos comen no sólo los tacos y burritos con ají, sino también la sandía, las cabritas, entre otras muchas cosas. Para otros sin embargo esto puede resultar una experiencia  bastante desagradable, incluso dolorosa. "Por favor no le pongan tanto ají!!".
 En la columna de esta semana hablaremos sobre la ciencia del ají, sobre el por que de sus efectos en el cuerpo, y sobre lo mucho que los científicos han aprendido a través del estudio de esta especie.

El ají no es algo nuevo en América, estudios antropológicos han demostrado que esta especia ya era consumida aquí hace más de 6000 años, y que fueron los europeos al explorar el nuevo continente, quienes luego lo introdujeron a lugares como India y Thailandia (actualmente conocidos por su comida picante). En Chile es común encontrar el ají verde y el ají cacho de cabra (para los mas fuertes dicen), sin embargo en el mundo la variedad es tremenda variando en color, forma, tamaño y por supuesto grado de picantés. Todas estas variantes sin embargo pertenecen a un mismo genero denominado Capsicum, el cual incluye al menos 25 especies diferentes, cada uno con sus propios variedades, pero con la característica común que todos ellos contienen en menor o menor grado, un componente químico llamado Capsaicina (Figura 1). Es precisamente la cantidad de este compuesto, la cual se mide en unidades Scoville (SHU, del inglés Scoville heat) la que determina el grado de picantés de un ají.

Figura 1:, estructura química tridimensional de la molécula de Capsaicina (carbono: gris; hidrógeno: blanco; oxígeno: rojo; nitrógeno: azul)

Capsaicina es una molécula hidrofóbica, lo cual significa que no se disuelve fácilmente en agua. Si analizamos la estructura de este compuesto entenderemos el porque, Capsaicina consiste en una cadena larga de átomos de carbono e hidrógeno, esta combinación genera una diferencia de carga muy pequeña entre los átomos que no será suficiente para romper las interacciones entre moléculas de agua e interactuar con estas para meterse en el medio. Esto es muy distinto a lo que pasa con la sal de mesa Na+Cl-, la cual es lo suficientemente polar para ser "aceptada" por las moléculas de agua e interactuar (disolverse con ellas). Esta propiedad hidrofóbica que muestra la capsaicina es muy importante, pues permite entender porque es aconsejable tomar leche o yogurt cuando la sensación picante resulta intolerable. La grasa de los lácteos tienen una estructuras bastante similares a la capsaicina (cadenas largas formadas por átomos de carbono e hidrógeno) y por lo tanto podrían interactuar con este compuesto "atrapándolo"(disolviéndolo) entre ellos, el mensaje aquí es que lo similar disolverá a lo similar y capsaicina y grasas son similares, mientras agua y ésta no lo son.

Ahora bien, qué es lo que produce esta sensación de picantés? Cuando capsaicina es ingerida ésta se enlaza y activa a un receptor llamado VR1 (del ingles vanilloid receptor subtype 1) presente en las neuronas receptoras de dolor en nuestra piel, boca y lengua. VR1 es un canal iónico, es decir, es una proteína que mediante la apertura de un poro en su estructura, permite el paso de elementos con carga eléctrica a través de la membrana de la célula. Se piensa que VR1 originalmente funcionó como un detector de altas temperaturas (para percibir quemaduras) puesto que sólo a temperaturas superiores a 43°C su poro se abre y permite que los iones pasen. Lo que resultó interesante de descubrir es que no solamente la temperatura puede abrir este canal, sino que también ciertas moléculas orgánicas, una de ellas es precisamente la capsaicina. Entonces este canal iónico al unirse a capsaicina se abre y permite la entrada de iones con carga positiva (cationes) tales como Ca2+, Mg2+ o Na+ (calcio, magnesio y sodio, respectivamente). Como la membrana de una neurona en reposo tiene un potencial eléctrico negativo en su interior, el ingreso de cationes hará que la membrana neuronal se despolarice (el valor del potencial se acerca transitoriamente a 0). De manera que la entrada de calcio, y la despolarización concomitante, generan una cascada de eventos moleculares que permiten que en la terminación de la neurona se liberen sustancias químicas que estimularán a la neurona siguiente, este proceso se denomina comunicación sináptica. Esta serie de estímulos mediados por neuronas terminarán siendo procesados por nuestro cerebro luego de viajar por el sistema nervioso periférico. Esta  señal será la misma que el cerebro percibiría si una se quemará o comiera ají merkén, esto explica la sensación de quemado, o ardor, que produce el ají (el cerebro sólo detecta la señal de disparo de neuronas producto de la activación del canal VR1 y no discrimina si ésta se generó por comer ají o es en realidad el resultado de una quemadura).


Figura 2: Canal ionico antes y después del enlace de Capsaisina a éste. Capsaicina induce un cambio estructural en la membrana celular permitiendo la apertura de un canal ionico el cual permite el ingreso de cationes (iones con carga positiva), principalmente Ca2+.

Se estima que al menos un tercio de la población mundial consume a diario algún tipo de ají. La pregunta del  millón entonces es, por qué tal gusto por el ají?... mmm la respuesta no resulta clara. A fines de los 70 en México salió al mercado un snack con sabor a ají pero sin capsaicina, saben que paso?  A los mexicanos no les gusto y el producto salió rápidamente del mercado, ellos no querían sólo el sabor sino también la sensación generada por esta molécula.

La exposición repetida a este compuesto genera cierta tolerancia permitiendo que uno pueda comer ajies más picantes y sentir el mismo efecto. Por otra parte, el dolor causado por esta sustancia conduce a la liberación de endorfina el analgésico natural que el cuerpo libera contra el dolor, generando una sensación de agrado, es posible que dicha sensación sea una de las causantes del gusto el ají.  Otros estudios sugieren que el gusto por el ají es netamente psicológico, y que se origina mas bien por el gusto como humanos de exponernos a experiencias de dolor o peligro, eso si  siempre y cuando sepamos que estos no significan un riesgo real.

El conocimiento del mecanismo de acción de esta molécula ha permitido a los científicos no sólo comprender el mecanismo de acción por el cual el cuerpo actúa frente a situaciones de dolor, sino que además a permitido generar una amplia variedad de usos industriales de este compuesto. Ejemplos de ello son su uso como spray repelente, como analgésico para el tratamiento de dolor crónico, aprovechando la tolerancia que se genera por la exposición repetida a este compuesto, o su uso como bactericida (capacidad de matar bacterias). Es sorprendente ver como este sencillo producto, así como tantos otros que pasan igualmente desapercibidos, puede ayudarnos a estudiar no sólo aspectos biológicos de nuestro cuerpo, sino también aspectos evolutivos y psicológicos. Es así como el día a día nos proporcionas las herramientas para generar ciencia.

FD & AL

martes, 22 de octubre de 2013

Ver para entender

En el estudio de la Biología se pasan muchas horas elucubrando soluciones para los problemas que están más allá de nuestra visión. Cuántas preguntas podrían ser fácilmente resueltas si tan sólo pudiéramos observar directamente aquello que es demasiado pequeño para nuestros ojos. En este artículo explicaremos como se ha intentado romper los límites visuales para estudiar los componentes "invisibles" de los seres vivos.

Para dimensionar el problema, tomemos como ejemplo a la famosa “molécula de la vida” o ADN (ácido desoxirribonucléico). Sabemos que  cada  molécula de ADN se forma a partir de dos cadenas de compuestos químicos, llamados nucleótidos, que se cruzan entre sí, formando una doble hélice (figura 1). El tamaño de esta estructura es del orden de los nanómetros (0.000000001 metros), es decir, algo miles de millones de veces más pequeño que un metro y un millón de veces más pequeño que una bacteria. Si bien el grosor de esta estructura es pequeño, su extensión puede llegar a los 3 kilómetros, y si se compacta lo suficiente, podemos verlo en la forma de cromosomas que pueden llegar a ser 1000 veces más grandes que el radio del ADN. Pero, en una escala tan pequeña, las características de las cosas que observamos cotidianamente se hacen difíciles de distinguir. Podemos preguntarnos ¿De qué color es el ADN?; ¿Qué forma tiene su estructura? o ¿Cómo se ven los cromosomas?; pero veremos que para responder esas preguntas se requiere superar una serie de limitaciones físicas.

Aunque existe una idea bastante idealizada del ADN, lo cierto es que nadie jamás lo ha visto, ni siquiera Jeff Goldblum (figura 2). En 1953, Watson y Crick dispusieron de un largo historial de pistas químicas que les permitieron deducir la estructura del ADN. Una de las pistas más decidoras fue el patrón de difracción de rayos X desarrollado por Rosalind Franklin  (figura 1), donde se encuentran elementos de simetría compatibles con la hélice propuesta. Sin duda que de haber sido capaces de observar directamente la hélice todo el trabajo químico se hubiera simplificado muchísimo. Es interesante recordar que, poco tiempo antes de este modelo, el doble premio nobel Linus Pauling erró en su predicción sobre la estructura. Él propuso un modelo en donde el ADN sería una triple y no doble hélice. Aclaremos que Pauling no tuvo la oportunidad de mirar esta imagen de la difracción de rayos X que para Watson y Crick resultó muy esclarecedora.  Este ejemplo,  pone  de  manifiesto  la  importancia  que  tiene  el  desarrollo  de tecnologías que nos permitan visualizar los detalles más finos de la naturaleza.

Figura 1. A la izquierda, una reproducción idealizada de la doble hélice. A la derecha, parte de la cruda y fría evidencia experimental de su estructura.

Figura 2. Jeff Goldblum en Jurassic Park. Segundos antes de decir : “la vida se abre camino”.

¿Cuál es el límite de lo visible?

El ojo humano tiene un límite de visión cercano a 10 -4 metros, es decir, una décima de milímetro, un tamaño parecido al grosor de un cabello humano.   Esto   implica que si existieran dos puntos brillantes a una distancia menor a dicho límite, simplemente los veríamos como un solo punto. Este es el tamaño más pequeño que podemos resolver, nuestro límite cotidiano de resolución a simple vista. Si no fuera por la ayuda de un microscopio, estaríamos  lejos, muy lejos de poder ver los millones de microorganismos que habitan nuestro cuerpo (o los componentes más pequeños de las células). Microscopio es una palabra griega que hace referencia a “ver lo pequeño”. 

Nuestros ojos están acondicionados para ver distancias que van desde 20 centímetros hasta el infinito. Esto podemos hacerlo mediante un sistema de lentes ajustable por musculatura. El problema aparece cuando queremos analizar elementos demasiado pequeños. Esto sucede porque el ángulo con que se proyecta la luz en nuestra retina será también muy pequeño, y por lo tanto, nuestro cerebro recibirá menos información visual, figura 3 A. Vemos que a cierta distancia aparece con claridad la forma de la torre Entel (líneas negras), pero si quisiéramos ver qué tipo de ladrillo tiene su base (líneas rojas), necesariamente disminuimos el ángulo con que la luz incide y perdemos capacidad de discriminar. Imaginen cuanto más pequeño sería el ángulo si quisiéramos ver una mosca posada en ese ladrillo, o más pequeño aún, alguna bacteria posada en sus alas. Este es el tipo de problemas que resuelve el sistema de lentes que usa un microscopio, pues permite magnificar el ángulo llegada de la luz a la retina, figura 3B. Este sistema basado en la detección de luz visible es la forma más antigua de microscopia y ha permitido avances espectaculares. Basta decir que toda la teoría  celular  que  sustenta  la  biología  fue  gracias  a  la  posibilidad  de  visualizar directamente células y microorganismos. La amplificación de estos aparatos puede llegar al orden de las 1000 veces, pero ¿podemos ir más allá de ese aumento?.

Figura 3. A. Representación del ojo humano visualizando la torre entel. Mientras más pequeños son  los  detalles  que  observamos  (línea  roja) menos es la información que podemos discriminar en la retina (menor ángulo). B. comparación del ángulo  de  incidencia en  la  retina  de  un  mismo objeto (flecha roja) con y sin microscopio (derecha)

Desde hace varios años es posible construir microscopios con lentes perfectos, donde ninguna aberración óptica logra disminuir la calidad de la imagen. Por otro lado, los sistemas digitales de detección se han depurado mucho, de manera que no existiría impedimento tecnológico para seguir viendo cosas progresivamente más pequeñas. Sin embargo, existe un límite intrínseco en la naturaleza ondulatoria de la luz que nos impide ir más allá.

La luz visible es una onda electromagnética cuya longitud oscila entre 400 y 700 nanómetros. Como les sucede a todas las ondas, la luz se desvía cada vez que encuentra un obstáculo físico en su camino, formando un patrón de interferencia característico. Este fenómeno es similar a lo que sucede cuando una onda pasa a través de una rendija e interfiere consigo misma tras chocar con los bordes (figura 4) o a las ondas que se encuentran en un lago  cuando dejamos caer dos objetos simultáneamente sobre él. De manera análoga, cuando la luz pasa a través de los lentes de un microscopio se forma un patrón de difracción con forma de anillo tridimensional o “Airy disk”. Esto produce que lo que vemos no sea una fuente puntual nítida de luz sino que una imagen más borrosa. Considerando esto último, Lord Raleigh estableció un criterio para distinguir entre dos ondas que sufren difracción. Este criterio se esquematiza en la figura 5 y establece que para poder discriminar entre dos puntos que emiten  luz, necesitamos una distancia mínima donde los máximos de intensidad de estas funciones de difracción no se solapen. En 1873 Ernst Abbe describió este mismo  comportamiento para telescopios y microscopios mediante una ecuación idéntica a la de Raleigh.

Figura 4. Patrón de difracción   de   una   onda que atraviesa una rendija. Las ondas interactúan consigo mismas tras chocar en los bordes de la hendidura, generando un patrón carácterístico. Esto mismo le sucede a la luz cuando  atraviesa  el  cristal de un lente.

Figura 5. Representación esquemática del límite de Raleigh. Gráfico de intensidad en función de la distancia para dos objetos puntuales. El límite de resolución lo constituye la distancia  mínima  d0   donde los  máximos  de  intensidad de dos focos luminosos no se solapan.


 Según la ecuación de Abbe, en un buen microscopio el límite de resolución está dado aproximadamente por la mitad de la longitud de onda incidente. Es decir, que si analizáramos  una  muestra  con  luz cercana  a  ultravioleta  (unos  400  nanómetros),  la máxima  resolución  que  obtendríamos  sería  igual  a  200  nanómetros.  Bajo  esas condiciones, no podemos distinguir detalles que estén a menor distancia. Por ejemplo, además del ADN, tampoco podremos distinguir virus o estructuras celulares como ribosomas y vesículas de transporte, puesto que no llegan a medir más de 100 nanómetros. Sin embargo, podremos ver con toda claridad la silueta de las bacterias o analizar, por ejemplo, alteraciones morfológicas en los cromosomas.

El límite de resolución fue considerado una especie de regla insuperable para la microscopia desde hace más de un siglo, sin embargo, el problema se ha resuelto de diferentes y originales maneras que abordaremos en una futura entrega del blog.

AL

sábado, 5 de octubre de 2013

¿Qué son los Agentes Nerviosos?

Durante los últimos meses hemos sido espectadores del drama vivido en Siria, tras el ataque químico que sufrió su población. No sabemos con certeza que tipo de sustancias fueron las utilizadas en dicho ataque, pero por los datos publicados y las imágenes recogidas por las cámaras parece probable que hayan sido agentes nerviosos, clasificados como armas de destrucción masiva de acuerdo a la ONU.

Si bien mucha gente no está familiarizada con la química o la forma de acción de estos compuestos, el sólo nombre de ellos nos alerta a todos acerca de su peligrosidad. Descubiertos durante la Alemania Nazi, estos compuestos fueron utilizados por primera vez en forma masiva en la guerra Irán-Iraq en los años 80', aunque con anterioridad varias fueron las victimas debido a la producción y transporte de dichos compuestos. En 1995 un grupo terrorista también utilizó un agente nervioso (Sarin) el cual liberó en un metro de Tokio, costando la vida de 13 personas. Actualmente Estados Unidos, Rusia, Corea del Norte y Siria aun poseen toneladas de estos compuestos.

Si miramos como lucen estas sustancias a escala molecular (Figura 1), veremos que todos ellos son muy parecidos, consistiendo un átomo de fósforo unido a cuatro grupos. El nombre químico de estos compuesto puede llegar a ser un poco complicado (por ejemplo el nombre químico del compuesto VX es O-etil S-[2(diisopropilamino)etil] metilphosphonotioato!!!), pero no es necesario saber dichos nombres para entender como estos funcionan. 

FIGURA 1: Nombre y estructura de algunos agentes nerviosos, ordenados cronológicamente (Tabun, Sarín y Ciclosarín fueron desarrollados en Alemania entre los años 1937-1944 y VX en Inglaterra en 1952). Representación: rojo: oxígeno, naranjo: fósforo, azul: nitrógeno, amarillo: azufre y gris: carbón (CLICK PARA AGRANDAR)

Recordemos que estos compuestos son líquidos a temperatura ambiente, variando en su grado de volatilidad (esto es, la facilidad de pasar de estado líquido a gas). Por ejemplo Sarín, al ser bastante volátil, ingresa al organismo principalmente en forma de gas a través de las vías respiratorias. Mientras que el compuesto VX, el cual es un líquido oleoso, lo hace por contacto con la piel. Cuando estos compuesto ingresan al cuerpo, ya sea por una vía u otra, se unen de forma irreversible a una enzima llamada Acetilcolinesterasa (AChE), la cual como veremos cumple un rol fundamental en el sistema nervioso. Esta enzima, en condiciones normales, es la responsable de controlar la cantidad de moléculas de acetilcolina(ACh) en el cuerpo. ACh es una pequeña molécula que estimula la actividad de músculos, glándulas y partes del cerebro. Cuando el cuerpo requiere activar un músculo ACh es liberada y luego cuando el cuerpo quiere desactivar dicho movimiento la enzima AChE se une a la molécula ACh y la rompe. Sin embargo, cuando un agente nervioso, ya sea Sarín o VX u otro, ingresa al cuerpo éste se une fuertemente a AChE, lo cual impide que el compuesto que comúnmente se enlaza a esta enzima logre hacerlo. Debido a ello se dice que los agentes nerviosos actúan como inhibidores enzimáticos, uniéndose y desactivan la enzima AChE. Cuando el sitio activo de la enzima AChE es ocupado por ejemplo por el compuesto VX (el cual es uno de los agentes nerviosos más peligrosos), ACh comienza a acumularse a una velocidad de más de 5000 moléculas por segundo por enzima inhibida!, lo cual es una cantidad enorme de ACh que hará que los músculos, glándulas y partes del cerebro permanezcan estimulados continuamente. Esta continua contracción puede, luego de un corto tiempo, fácilmente conducir a la muerte.

FIGURA 2: En condiciones normales ACh se une a la enzima en su sitio activo. Sin embargo, cuando un agente nervioso, por ejemplo VX, se une a ella VX actúa como inhibidor impidiendo que ACh se una. (CLICK PARA AGRANDAR)

Si comparamos la estructura química de ACh con VX veremos que ellas son similares, la diferencia es que en vez del enlace Fósforo-Oxígeno (P=O), la molécula ACh posee un enlace Carbono-Oxígeno (C=O). Ambos grupos forman parte de un enlace con la enzima. Sin embargo en el caso de VX este enlace no se rompe y la enzima queda atrapada con dicho compuesto.

Para finalizar, es importante destacar que la misma idea de inhibidor enzimático, que resulta tan fatal en este caso, es utilizada a diario en cientos de medicamentos. Estos medicamentos actúan ya sea corrigiendo desequilibrios en  el funcionamiento del organismo, matando elementos ajenos a nuestro cuerpo, y/o controlando varias enfermedades. El diseño racional, donde el conocimiento a nivel molecular de la enzima y molécula que se enlazada son utilizados como base para el diseño de nuevos fármacos, ha conducido, en conjunto con otras tecnologías, a importantes avances para el bienestar humano.

Fármacos para el tratamiento de cáncer, y para el combate de virus tales como la influenza y SIDA han sido el resultado de dicho enfoque. Es de esperar que sepamos mas noticias sobre estos avances y ninguna otra sobre algún tipo de ataque con agentes nervios u otro tipo de químicos.

FD